Są kwiaty Phalaenopsis, przy których wzrok zatrzymuje się odrobinę dłużej. Wszystko wydaje się znajome, a jednak coś nie pasuje. Kształt jest zbyt regularny, środek kwiatu jakby zwielokrotniony, charakterystyczny rysunek warżki pojawia się tam, gdzie zwykle go nie ma. Przyglądamy się jeszcze raz i znajdujemy najprostsze wyjaśnienie: ten storczyk ma trzy warżki.
Tyle że nie ma.
To, co wygląda jak dwie dodatkowe warżki, jest czymś znacznie ciekawszym. Są to boczne płatki kwiatu, które podczas rozwoju zaczęły przejmować cechy warżki: jej kształt, barwę, wzór, czasem także charakterystyczne zgrubienia i pofałdowania. Nie przybyło więc żadnych części. Zmieniło się to, jak zostały zbudowane te, które były tam od początku.
Tak powstaje najbardziej rozpoznawalna postać pelorii u Phalaenopsis. Dla hodowcy może być atrakcyjną cechą, dla kolekcjonera powodem do zachwytu albo zdecydowanej niechęci, dla biologa zaś czymś jeszcze innym: okazją, by podejrzeć reguły, według których roślina buduje kwiat. Peloria jest bowiem interesująca nie tylko dlatego, że tworzy niezwykłe formy. Znacznie ciekawsze pytanie brzmi: skąd zwyczajny płatek wie, że ma zostać zwyczajnym płatkiem i co musi się wydarzyć, żeby zaczął przypominać warżkę?
Odpowiedź prowadzi do rozwijającego się pąka, genów sterujących jego budową i ewolucyjnej historii storczyków. Zanim jednak tam zajrzymy, warto dobrze obejrzeć sam kwiat. To właśnie na nim natura pozostawiła pierwszą wskazówkę.
W tym artykule — kliknij, aby rozwinąć ↓— kliknij, aby zwinąć ↑
Słowniczek — kliknij, aby rozwinąć ↓— kliknij, aby zwinąć ↑
Kwiat, w którym coś się nie zgadza
Kwiat Phalaenopsis oglądamy zazwyczaj jako całość. Dostrzegamy jego barwę, wielkość, rysunek, szerokość płatków, może szczególnie efektowną warżkę. Rzadko zatrzymujemy się nad tym, że cała ta kompozycja została zbudowana według bardzo precyzyjnego planu. Wystarczy jednak porównać zwykły kwiat z pelorycznym, żeby plan stał się widoczny.
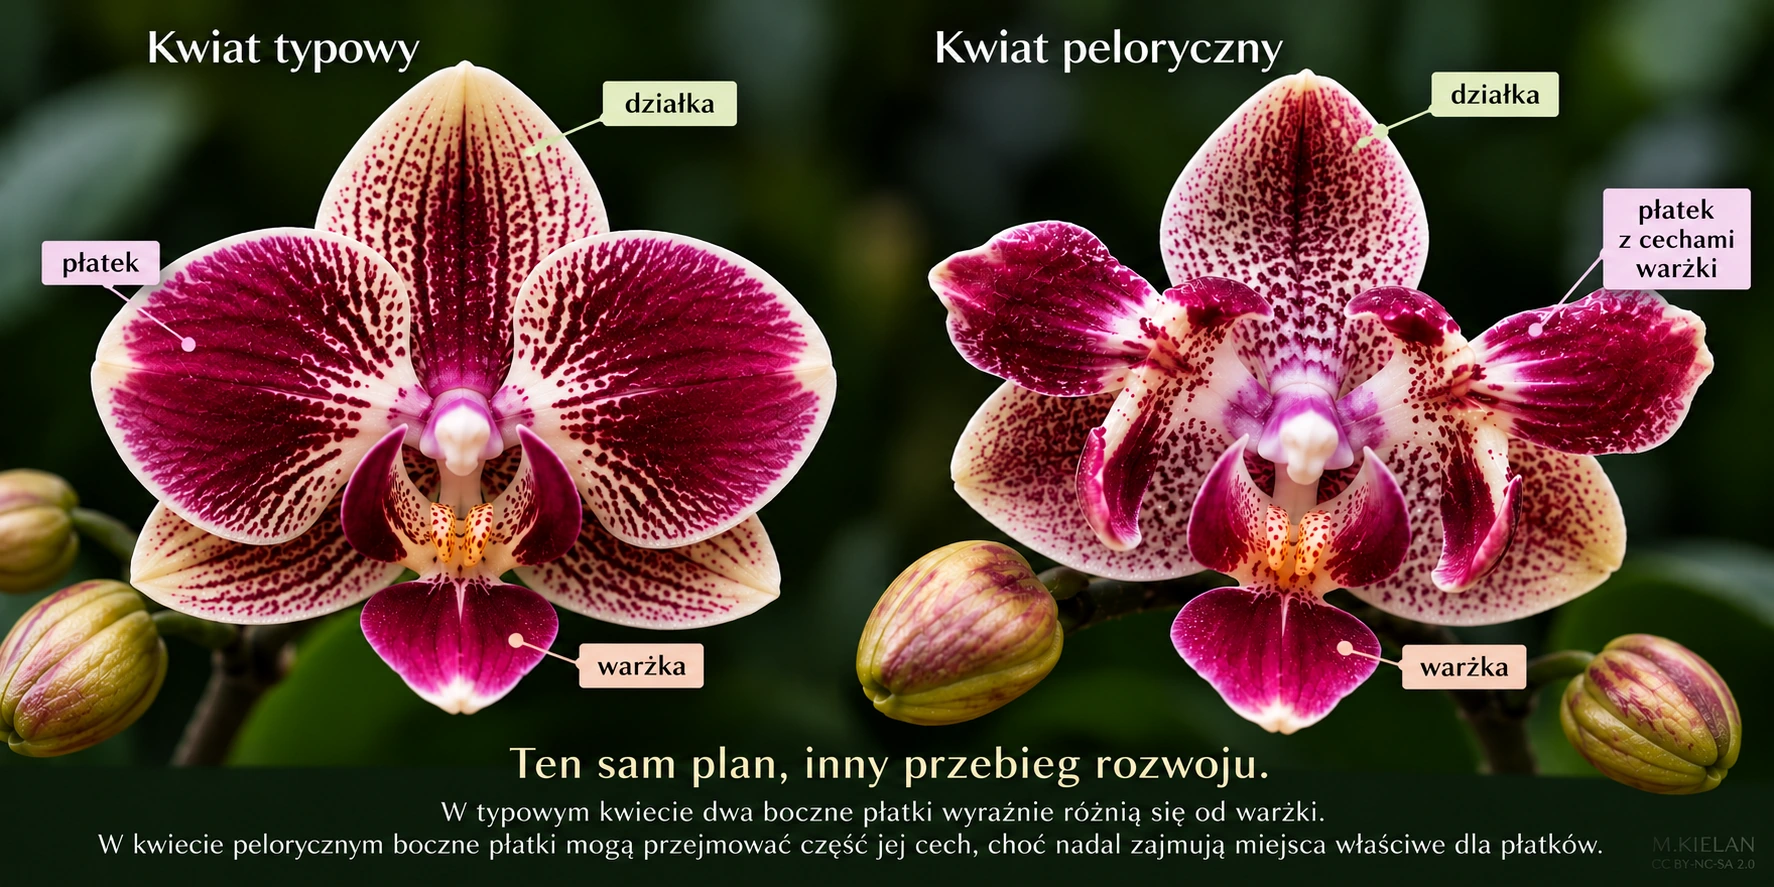
Typowy kwiat ćmówki składa się z dwóch okółków okwiatu. W zewnętrznym znajdują się trzy działki, nazywane też sepalami. Wewnętrzny tworzą trzy płatki: dwa boczne oraz trzeci, wyraźnie od nich odmienny, czyli warżka, labellum. W środku znajduje się jeszcze charakterystyczna dla storczyków kolumna, skupiająca struktury związane z rozmnażaniem. Wszystkie te elementy mają swoje miejsca, a ich różnice nie są dekoracyjnym kaprysem. Tworzą charakterystyczną dla kwiatu Phalaenopsis budowę dwubocznie symetryczną: jego prawa i lewa strona odpowiadają sobie, natomiast góra i dół zdecydowanie nie są tym samym.
Najłatwiej zauważyć to właśnie po warżce. Jest jednym z trzech płatków wewnętrznego okółka, ale w toku ewolucji została niezwykle wyspecjalizowana. Może różnić się od bocznych płatków niemal wszystkim: kształtem, kolorem, fakturą powierzchni i obecnością rozmaitych wyrostków czy zgrubień. U dzikich storczyków nie powstała po to, żeby człowiek miał co fotografować. Jest częścią całego systemu współpracy, a czasem bardzo wyrafinowanej manipulacji, między kwiatem a jego zapylaczem.
W pelorycznym Phalaenopsis ten uporządkowany układ zaczyna wyglądać inaczej. Dwa boczne płatki mogą powtarzać barwny wzór warżki albo zmieniać swój kształt. Ich brzegi bywają bardziej pofałdowane, powierzchnia nabiera innej faktury, pojawiają się elementy przypominające struktury typowe dla warżki. Czasami podobieństwo pozostaje niewielkie i trzeba wiedzieć, czego szukać. Innym razem jest tak wyraźne, że trzy elementy wewnętrznego okółka wyglądają niemal jak kopie, a cały kwiat staje się zaskakująco regularny.
Stąd wzięło się popularne określenie „Phalaenopsis z trzema warżkami”. Jako opis tego, co widzi oko, jest całkiem niezłe. Jako opis tego, co wydarzyło się podczas rozwoju kwiatu, już nie.
Boczne płatki nie zostały zastąpione dwiema nowymi warżkami. Nadal powstały dokładnie w tych miejscach, w których powinny powstać płatki, lecz część programu odpowiedzialnego za ich rozwój przebiegła inaczej. W botanice taką zmianę, gdy jeden organ zaczyna przyjmować cechy innego, określa się mianem zmiany homeotycznej. Nazwa może brzmieć groźniej niż samo zjawisko. W tym przypadku wystarczy zapamiętać obraz: płatek pozostał na swoim miejscu, ale zaczął wyglądać tak, jakby dostał instrukcję przeznaczoną dla warżki.
Peloria nie jest ani gorszą wersją kwiatu, ani lepszą. Jest innym przebiegiem rozwoju.
Stopień tej przemiany może być bardzo różny. Peloria nie musi więc oznaczać idealnego, trójramiennego kwiatu, w którym trzy elementy wyglądają identycznie. Zdarzają się formy częściowe, asymetryczne oraz takie, w których cechy warżki zaznaczają się tylko w pewnych fragmentach bocznych płatków. Istnieją również rzadsze peloryczne zmiany przebiegające w przeciwnym kierunku, kiedy to warżka zaczyna upodabniać się do zwykłego płatka. Natura ma najwyraźniej więcej niż jeden sposób na przemeblowanie tego samego pokoju.
Warto przy tym zachować odrobinę botanicznej podejrzliwości. Nie każdy dziwny kwiat jest peloryczny. Uszkodzenie rozwijającego się pąka, zaburzenia fizjologiczne czy żerowanie szkodników również mogą pozostawić po sobie kwiat zdeformowany, niesymetryczny albo niepełny. Peloria nie oznacza po prostu „czegoś dziwnego”. Jej istotą jest rozpoznawalna zmiana tożsamości określonych części kwiatu.
Kiedy już to wiemy, peloryczny Phalaenopsis zaczyna wyglądać inaczej. Przestajemy widzieć trzy warżki i zaczynamy dostrzegać trzy historie rozwoju zapisane obok siebie: warżkę, która zrobiła dokładnie to, co zwykle, oraz dwa płatki, których droga potoczyła się trochę inaczej.
Pozostaje pytanie, od którego właściwie zaczyna się cała zabawa: skąd rozwijający się płatek wie, którą z tych dróg wybrać?
Trudna zagadka tożsamości
Zanim kwiat Phalaenopsis rozwinie się nad doniczką, przez długi czas istnieje w zupełnie innej postaci. W maleńkim pąku nie ma jeszcze szerokich płatków, fantazyjnej warżki ani wzorów, które później będziemy oglądać pod światło. Są młode, intensywnie dzielące się komórki i miejsca, z których stopniowo powstaną poszczególne części kwiatu.
To właśnie wtedy zapadają najważniejsze decyzje.
Komórka nie ma przecież oczu. Nie widzi kwiatu, który ma powstać, i nie wie, że znajduje się kilka milimetrów na lewo od przyszłej warżki. Musi rozpoznać swoje położenie dzięki sygnałom docierającym z rozwijających się tkanek, a następnie uruchomić odpowiedni zestaw genów. W jednym miejscu zaczyna więc powstawać działka, w innym płatek, w jeszcze innym warżka. Z milionów takich lokalnych decyzji wyłania się w końcu uporządkowany kwiat.
Słowo „gen” często przywołuje wyobrażenie przepisu: jeden gen odpowiada za kolor, drugi za kształt, trzeci za warżkę. Rozwój kwiatu działa jednak subtelniej. Geny mogą wpływać na aktywność innych genów, wzajemnie wzmacniać swoje działanie albo je ograniczać. Liczy się również miejsce i moment ich aktywności. Ostateczny kształt organu jest więc rezultatem współpracy wielu elementów tego samego programu.
Storczyki dołożyły do tego własną ewolucyjną komplikację, która okazała się wyjątkowo twórcza. Dawne geny uczestniczące w budowie płatków zostały w historii tej rodziny kilkakrotnie powielone. Takie dodatkowe kopie nie musiały już wykonywać dokładnie tej samej pracy. Z czasem ich zadania zaczęły się różnicować, a roślina zyskała możliwość tworzenia elementów okwiatu coraz bardziej odmiennych od siebie. Warżka jest jednym z najbardziej niezwykłych rezultatów tej ewolucyjnej historii.
Badacze porównujący zwykłe i peloryczne storczyki zauważyli, że w działkach, bocznych płatkach i warżce te spokrewnione geny nie działają w identyczny sposób. Różnią się miejsca ich aktywności i jej natężenie. Nie wystarczy więc zapytać, czy określony gen działa. Trzeba zobaczyć, którzy z jego krewnych są aktywni razem i jak silnie każdy z nich daje o sobie znać.
Z tych obserwacji powstał model nazwany Orchid Code, czyli kodem storczyka. Jego podstawową ideę można wyobrazić sobie bez zaglądania do podręcznika genetyki. Roślina dysponuje kilkoma spokrewnionymi instrukcjami. Ich różne kombinacje pomagają określić, czy rozwijająca się część okwiatu przyjmie cechy działki, zwykłego płatka czy wyspecjalizowanej warżki.
To trochę jak zestaw suwaków na pulpicie. Wszystkie należą do tego samego urządzenia, ale rezultat zależy od ich wzajemnego ustawienia. Jedna konfiguracja sprzyja powstaniu działki, inna płatka, jeszcze inna warżki. Peloryczny kwiat jest szczególnie interesujący dlatego, że w bocznych płatkach układ zaczyna przypominać ten charakterystyczny dla warżki.
Dopiero w tym miejscu przydają się nazwiska bohaterów tej historii. Ważną rolę odgrywają geny należące do rodziny DEF/AP3, u Phalaenopsis reprezentowane przez kilka spokrewnionych kopii. Nie trzeba ich zapamiętywać. Istotniejsze jest to, czego dzięki nim się dowiedzieliśmy: roślina nie przechowuje gdzieś pojedynczego polecenia „zbuduj warżkę”. Jej tożsamość powstaje z określonego układu współdziałających instrukcji.
Orchid Code okazał się niezwykle ważnym pierwszym modelem, ale nie ostatnim rozdziałem tej historii. Późniejsze badania ujawniły kolejne geny i białka uczestniczące w ustalaniu tożsamości poszczególnych części kwiatu. Jedne sprzyjają wykształcaniu cech warżki, inne pomagają utrzymać zwykłą tożsamość płatka. Powstaje sieć zależności znacznie bogatsza niż prosty przełącznik z dwiema pozycjami.
Można byłoby w tym miejscu zapełnić pół strony nazwami genów. Niewiele by nam to jednak powiedziało o samym kwiecie. Najważniejsze odkrycie jest prostsze: warżka powstaje dlatego, że w określonym miejscu rozwijającego się pąka uruchamia się właściwa kombinacja programu rozwojowego.
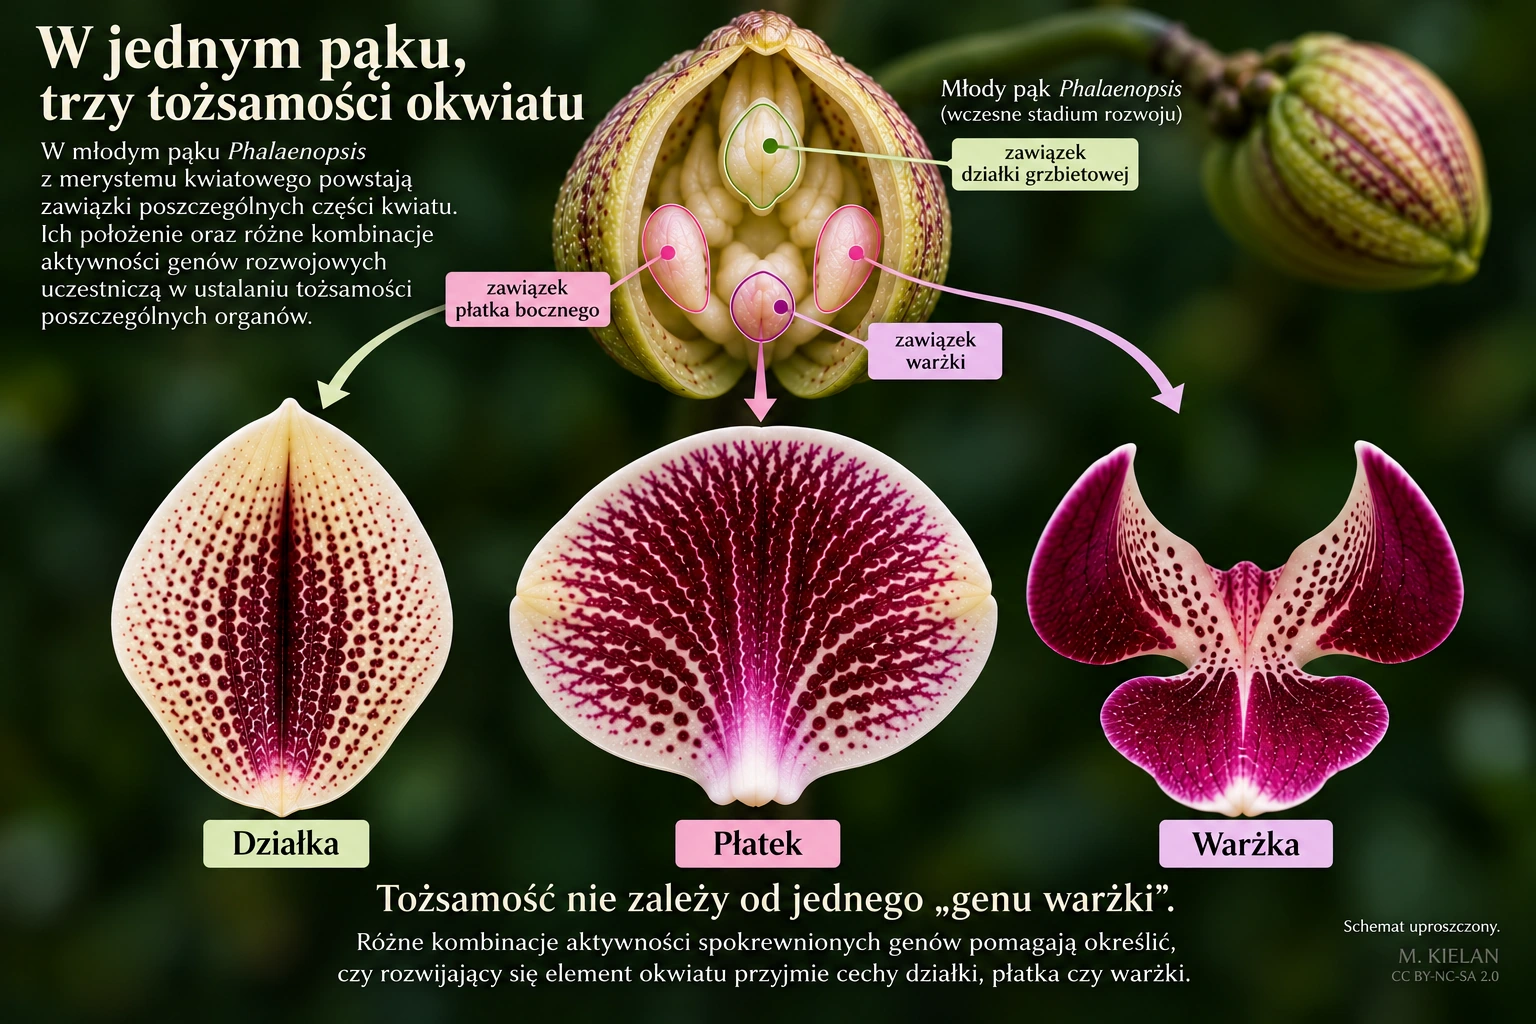
Jeżeli podobna kombinacja pojawi się tam, gdzie powinien rozwijać się boczny płatek, jego dalsza historia zaczyna wyglądać inaczej. Nie budzi się któregoś ranka jako warżka. Zmiana zachodzi stopniowo, podczas wzrostu tkanek, kiedy kształt, powierzchnia i barwa organu dopiero się tworzą. Ostatecznie otrzymujemy płatek, który może zachować część swojej zwykłej postaci, a jednocześnie przejąć niektóre cechy warżki.
Dlatego peloria nie zawsze wygląda tak samo. W jednym kwiecie podobieństwo ograniczy się niemal do wzoru barwnego, w innym obejmie również kształt, fakturę i budowę płatka. To, co kolekcjoner opisuje jako „mniej” albo „bardziej” peloryczne, jest widocznym rezultatem tego, jak daleko program rozwoju bocznego płatka przesunął się w stronę programu warżki.
Czas więc przyjrzeć się temu dziwadłu z jeszcze większym szacunkiem. Ono nie tylko złamało regułę. Pomogło ją odkryć.
Kwiat, który zdradził regułę
W biologii osobliwości bywają wyjątkowo rozmowne. Roślina, której rozwój przebiega zgodnie z typowym planem, pokazuje przede wszystkim efekt końcowy. Mutant potrafi zdradzić, z jakich elementów ten plan został złożony.
Peloryczny Phalaenopsis jest pod tym względem niemal wymarzonym świadkiem. W jednym kwiecie można znaleźć organy należące do tego samego okółka, ale realizujące różne wersje programu rozwojowego. Jest zwykła warżka, są działki, a zamiast dwóch typowych bocznych płatków pojawiają się struktury, które w mniejszym lub większym stopniu przypominają warżkę. Jeżeli porównamy, które geny są aktywne w każdej z tych części, zaczynamy widzieć różnice ukryte pod widocznym kształtem.
Właśnie takie porównania okazały się niezwykle cenne. Badacze pobierali tkanki z poszczególnych części kwiatów i sprawdzali aktywność genów związanych z ich rozwojem. Jeżeli pewien wzorzec pojawiał się w zwykłej warżce, nie występował w normalnym płatku, a następnie odnajdywano go w płatku warżkopodobnym, trudno było przejść obok takiej wskazówki obojętnie.
Sam związek nie wystarczał do ogłoszenia rozwiązania zagadki. To, że dwie rzeczy występują razem, nie dowodzi jeszcze, że jedna powoduje drugą. Dlatego kolejne badania sprawdzały działanie poszczególnych genów, porównywały różne mutanty i obserwowały, co dzieje się wtedy, gdy aktywność wybranych elementów programu zostaje zmieniona. Krok po kroku z obserwacji niezwykłego kwiatu zaczęła wyłaniać się wiedza o budowie całkiem zwyczajnego.
Peloriki dostarczyły przy tym czegoś, czego trudno byłoby sobie życzyć w lepiej zaplanowanym doświadczeniu: naturalnego porównania płatka, warżki oraz płatków przejmujących cechy warżki w różnym stopniu. Jeżeli boczny płatek przejmuje tylko część cech warżki, można zestawić jego wygląd z tym, co dzieje się wewnątrz jego komórek. Jeśli przemiana jest silniejsza, można sprawdzić, czy zmienia się również aktywność kolejnych elementów programu. Widoczna gołym okiem różnica zaczyna wtedy pełnić rolę drogowskazu prowadzącego do procesów, których zobaczyć nie możemy.
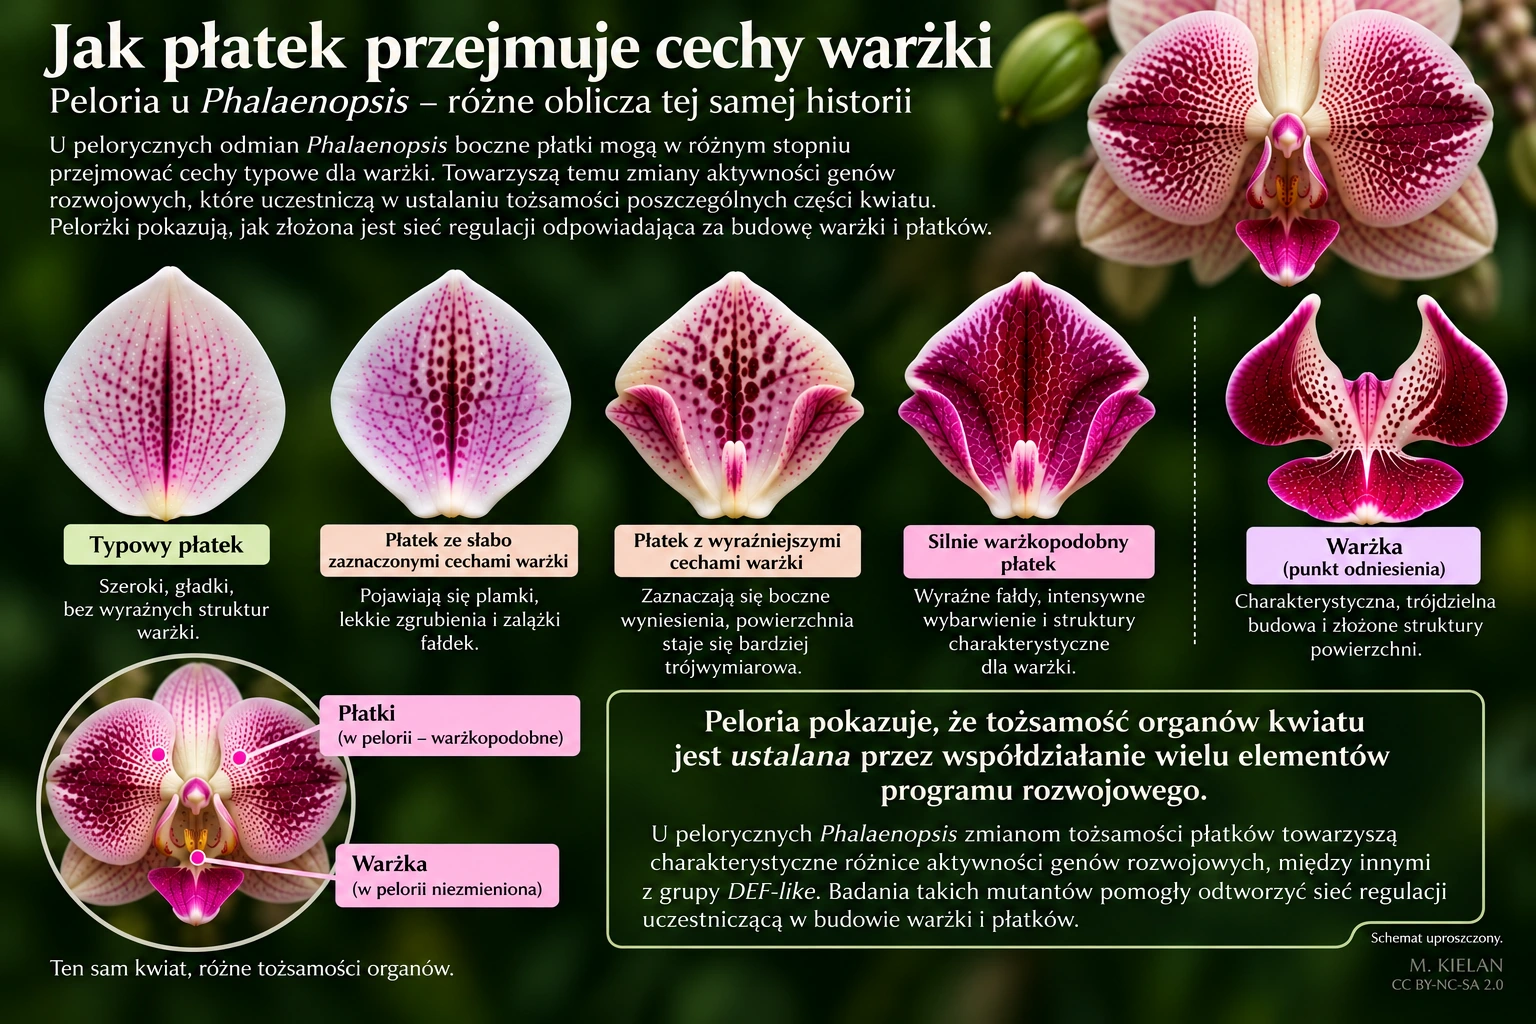
Takie badania pozwalały sprawdzać przewidywania Orchid Code na rzeczywistych kwiatach i pytać, czy określonym zmianom wyglądu rzeczywiście towarzyszą oczekiwane różnice w działaniu genów. Z czasem okazało się również, że pierwszy model nie wyjaśnia wszystkiego. Do znanych już uczestników dołączali następni, a obraz programu budującego kwiat stawał się coraz pełniejszy.
To normalna kolej rzeczy w nauce. Dobry model nie musi być ostatnim słowem. Ma przede wszystkim tłumaczyć to, co obserwujemy, i pozwalać zadawać następne pytania. Jeżeli nowe wyniki pokazują, że rzeczywistość jest bogatsza, model można rozbudować albo zmienić. Kwiat nie ma obowiązku stosować się do naszego pierwszego pomysłu na jego działanie.
Peloryczne Phalaenopsis pomogły również dostrzec coś jeszcze. Warżka nie jest po prostu bocznym płatkiem, któremu dodano kilka ozdobników. Jej odmienność zaczyna się znacznie wcześniej, podczas ustalania tożsamości rozwijającego się organu. Późniejszy kształt, faktura, wyrostki i wzór barwny są widocznym skutkiem procesów rozpoczętych wtedy, gdy cały pąk był jeszcze bardzo mały.
To wyjaśnia, dlaczego peloria potrafi objąć jednocześnie kilka cech. Płatek nie zostaje najpierw zbudowany normalnie, a później ktoś domalowuje mu wzór warżki i marszczy brzegi. Zmieniona instrukcja działa podczas jego powstawania. Jeśli obejmuje dużą część programu, rezultat może dotyczyć zarówno barwy, jak i kształtu czy budowy powierzchni. Jeżeli zmiana jest mniejsza, ślady warżki mogą być znacznie subtelniejsze.
Najbardziej pouczające są jednak przypadki, które nie pasują idealnie do prostego schematu. Jeden mutant może tworzyć niemal doskonałe warżkopodobne płatki, drugi tylko częściowo zmienione, jeszcze inny zachowywać się inaczej w kolejnych kwiatach. Zamiast przeszkadzać w badaniach, taka różnorodność daje kolejne punkty porównania. Każde odstępstwo stawia trochę inne pytanie o to, które fragmenty programu rozwoju są ze sobą związane, a które mogą zmieniać się niezależnie.
W ten sposób kwiat uznany kiedyś za botaniczną osobliwość stał się narzędziem badawczym. Nie trzeba było wymyślać pelorii, żeby poznać reguły budowy storczykowego kwiatu. Natura sama przygotowała eksperyment, tyle że nie dołączyła instrukcji obsługi.
Naukowcom pozostało ją odczytać.
Peloryczny Phalaenopsis zdradził dzięki temu coś znacznie ważniejszego niż sekret własnego niezwykłego wyglądu. Pomógł odpowiedzieć na pytanie, które dotyczy każdego kwiatu ćmówki: w jaki sposób z pozornie podobnych zaczątków powstają części tak różne jak zwykły płatek i warżka?
Pozostaje jednak druga zagadka. Skoro znamy już część mechanizmu, który pozwala płatkowi przyjąć cechy warżki, skąd bierze się samo odstępstwo? Dlaczego u jednej rośliny program przebiega zgodnie ze zwykłym planem, a u innej skręca w boczną uliczkę?
Tutaj historia prowadzi nas z rozwijającego się pąka do miejsca, w którym człowiek produkuje Phalaenopsis tysiącami: do laboratorium kultur tkankowych.
Laboratorium pełne niespodzianek
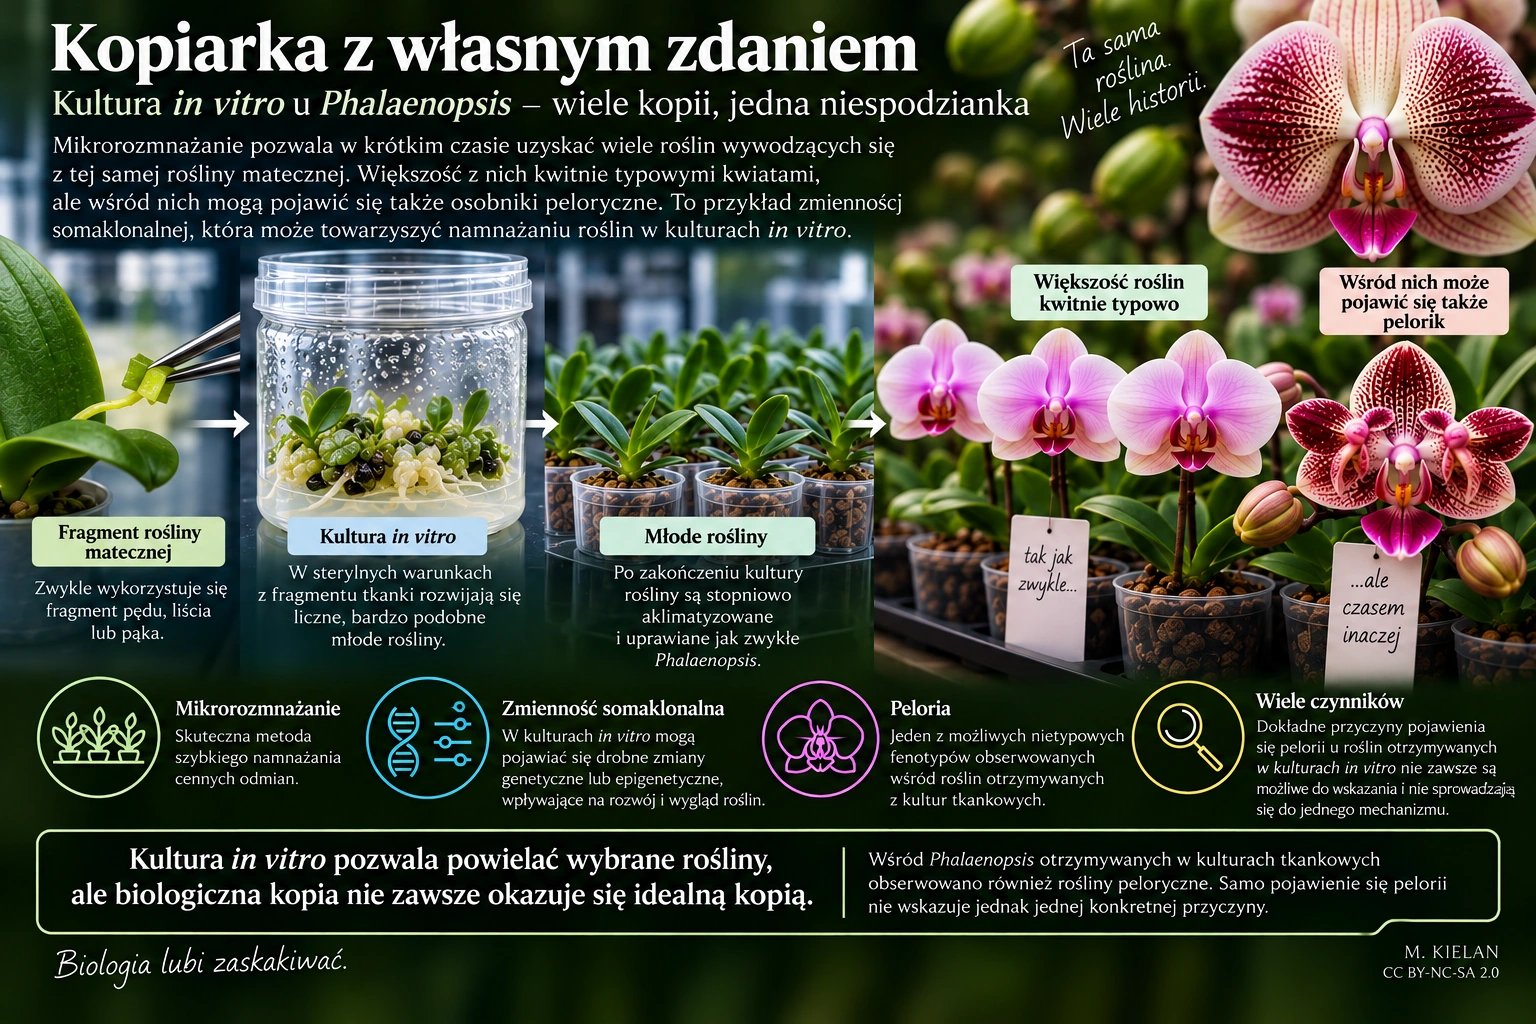
Gdyby rośliny rozmnażane w kulturach tkankowych zachowywały się jak idealna kopiarka, sprawa byłaby prosta. Z niewielkiego fragmentu wybranej rośliny można otrzymać ogromną liczbę potomnych egzemplarzy, które zachowują jej pożądane cechy. W przypadku Phalaenopsis ma to ogromne znaczenie. Jeżeli hodowca uzyska roślinę o wyjątkowo pięknych kwiatach, nie musi liczyć na to, że jej potomstwo z nasion okaże się równie udane. Może próbować ją powielić.
Tyle że biologiczna kopiarka czasem wprowadza własną korektę autorską.
Rośliny powstające podczas mikrorozmnażania nie zawsze są identyczne z materiałem, od którego rozpoczęto hodowlę. W trakcie wielokrotnych podziałów komórek i regeneracji całych roślin mogą pojawiać się różnice, których wcześniej nie było. Zjawisko to nazywa się zmiennością somaklonalną. Obejmuje ono rozmaite cechy, od tempa wzrostu i budowy rośliny po wygląd kwiatów.
Peloria należy do zmian obserwowanych również u Phalaenopsis uzyskiwanych w kulturach in vitro. To ważny trop, ale trzeba obchodzić się z nim ostrożnie. Fakt, że peloryczne rośliny pojawiały się podczas mikrorozmnażania, nie oznacza, że kultura tkankowa ma prosty przycisk z napisem „zrób warżkę z płatka”. Pokazuje jedynie, że proces ten może sprzyjać powstawaniu lub ujawnianiu zmian prowadzących do nietypowego rozwoju kwiatu.
Jeszcze większą ostrożność warto zachować przy cytokininach. Te roślinne regulatory wzrostu są powszechnie wykorzystywane w kulturach tkankowych, między innymi dlatego, że wpływają na podziały komórkowe i regenerację pędów. Stąd już bardzo łatwo wykonać kuszący skrót myślowy: skoro w pożywce były cytokininy, a wśród otrzymanych roślin pojawiła się peloria, to cytokininy ją wywołały.
Biologia rzadko rozdaje tak wygodne odpowiedzi.
Warunki kultury in vitro tworzą dla komórek środowisko zupełnie odmienne od tego, w którym funkcjonują w rosnącej roślinie. Tkanki są pobudzane do intensywnych podziałów, przechodzą proces regeneracji, a ich aktywność genowa musi zostać odpowiednio przeorganizowana. Zmienność somaklonalna może mieć podłoże genetyczne, ale również epigenetyczne, czyli związane ze zmianami sposobu działania genów bez zmiany samej sekwencji DNA. Wielokrotne podziały komórek i kolejne etapy regeneracji stwarzają przy tym okazje do pojawienia się nieplanowanej zmienności.
Dlatego zdanie „cytokininy powodują pelorię” byłoby znacznie mocniejsze niż pozwalają stwierdzić dostępne dane. Wiemy, że peloryczne Phalaenopsis mogą pojawiać się wśród roślin otrzymanych in vitro. Wiemy również, że u takich mutantów wykrywano zmiany aktywności genów związanych z tożsamością poszczególnych części kwiatu, a w niektórych przypadkach także zmiany w obszarach regulujących ich działanie. Nie mamy natomiast jednego uniwersalnego mechanizmu, którym można wyjaśnić powstanie każdej pelorycznej ćmówki.
Nie wszystkie takie zmiany muszą mieć jednakowe podłoże, co pomaga zrozumieć, dlaczego peloria nie zawsze zachowuje się równie stabilnie.
Jeżeli zmiana ma trwałe podłoże genetyczne i jest zachowywana podczas rozmnażania, niezwykły kształt kwiatów może pojawiać się bardzo konsekwentnie. W innych przypadkach ekspresja cechy bywa mniej regularna. Poszczególne kwiaty tej samej rośliny mogą różnić się stopniem peloryczności, a kolejne kwitnienie nie zawsze wygląda dokładnie tak samo jak poprzednie. Sam wygląd kwiatu nie mówi nam jeszcze, jaka zmiana doprowadziła do jego powstania ani jak trwała się okaże.
W tym miejscu do storczykowych opowieści chętnie wchodzą temperatura, światło, podlewanie i wszelkie inne podejrzane, które akurat znajdowały się w pobliżu doniczki. Rzeczywiście, środowisko wpływa na rozwój roślin i aktywność ich genów. Nie oznacza to jednak, że zniknięcie albo pojawienie się pelorycznych cech w kolejnym kwitnieniu można automatycznie przypisać zmianie temperatury, wilgotności czy sposobu podlewania. Bez odpowiedniego doświadczenia pozostaje to przypuszczeniem, nawet jeśli brzmi bardzo przekonująco w internetowej dyskusji.
Najbezpieczniej więc potraktować peloryczny kwiat dokładnie tak, jak zrobili to badacze: jako wynik procesu, którego przyczynę trzeba dopiero ustalić, a nie gotową odpowiedź na pytanie, co wydarzyło się wcześniej.
Laboratorium kultur tkankowych ma w tej historii jeszcze jedną przewrotną rolę. Może być miejscem, w którym pojawi się niepożądane odstępstwo od wzorca, ale kiedy owo odstępstwo okaże się piękne, może również pomóc je zachować i powielić. To, co jednego dnia jest produkcyjnym kłopotem, następnego może stać się rośliną, za którą kolekcjonerzy ustawią się w kolejce.
W tym momencie peloria opuszcza laboratorium biologa i trafia na stół hodowcy. Tam pytanie brzmi już nie tylko: „co się stało?”, lecz również: „czy da się to zatrzymać?”
Inny, czasem znaczy lepszy
W naturze nie istnieje kategoria „ładny mutant”. Zmiana po prostu się pojawia. Może okazać się dla rośliny korzystna, obojętna albo niekorzystna, może zostać przekazana potomstwu albo zniknąć wraz z pojedynczym osobnikiem. Dopiero człowiek patrzy na nietypowy kwiat i dochodzi do wniosku, że właśnie taki chciałby zobaczyć ponownie.
W tym momencie przypadek spotyka selekcję.
Hodowca nie musi stworzyć pelorii, żeby wykorzystać ją w hodowli. Wystarczy, że zauważy interesującą zmianę, oceni jej trwałość i spróbuje ją zachować. Jeżeli peloryczna roślina może zostać skutecznie rozmnożona wegetatywnie, kultura in vitro, która wcześniej była jednym z miejsc pojawiania się nieplanowanej zmienności, staje się narzędziem służącym do powielania wybranego fenotypu.
Kopiarka dostała więc poprawiony egzemplarz i tym razem oczekujemy, że żadnej korekty autorskiej już nie wprowadzi.
Nie każdą pelorię można jednak równie łatwo utrwalić. Sam fakt, że pojedynczy kwiat wygląda niezwykle, nie gwarantuje jeszcze, że następne będą wyglądały tak samo. Hodowca musi więc obserwować roślinę podczas kolejnych kwitnień i sprawdzać, czy cecha jest powtarzalna. Dopiero stabilny, atrakcyjny fenotyp staje się naprawdę interesujący z punktu widzenia produkcji.
Inną drogą jest hodowla generatywna, czyli rozmnażanie z nasion i krzyżowanie roślin. Tutaj sytuacja staje się bardziej nieprzewidywalna. Potomstwo nie jest kopią rodziców, lecz otrzymuje własną kombinację ich cech. Jeśli skłonność do określonej formy pelorii ma dziedziczne podłoże, odpowiedni dobór rodziców i wielopokoleniowa selekcja mogą zwiększać szansę uzyskania kolejnych roślin o pożądanym wyglądzie. Nadal jednak trzeba je wysiać, doprowadzić do kwitnienia i zobaczyć, co właściwie powstało. Storczyk nie czyta katalogu hodowcy przed podjęciem decyzji.
Właśnie dlatego określenie „celowa selekcja” jest tutaj trafniejsze niż „celowe stworzenie”. Człowiek może wybierać rośliny o interesujących cechach, krzyżować je, oceniać potomstwo i zachowywać najlepsze rezultaty. Historia konkretnego pelorycznego kwiatu nadal może jednak zaczynać się od zmiany, której nikt wcześniej nie zaplanował.
Z czasem takie odstępstwo może przestać wyglądać jak odstępstwo. Jeśli hodowcy konsekwentnie wybierają określony typ kwiatu, a producenci go rozmnażają, trafia on do sprzedaży już nie jako przypadkowa osobliwość, lecz jako świadomie oferowana cecha ozdobna. To, co kiedyś mogło zostać odrzucone jako roślina niezgodna z wzorcem, staje się powodem, dla którego właśnie tę roślinę ktoś wybiera spośród dziesiątek innych.
Peloria przebyła więc osobliwą drogę. Najpierw była nietypowym wariantem budowy kwiatu. Później pomogła biologom zajrzeć w mechanizmy, które tę budowę tworzą. W rękach hodowców mogła stać się cechą wybieraną, zachowywaną i powielaną.
Czy jest zatem kaprysem natury, czy rezultatem celowej selekcji?
Jednym i drugim, choć nie zawsze w tej samej kolejności i nie w każdym przypadku. Natura dostarcza zmienności. Człowiek decyduje, która z jej wersji jest dla niego na tyle interesująca, że warto ją zatrzymać.
Wróćmy więc na chwilę do kwiatu, od którego zaczęliśmy.
Widzimy Phalaenopsis o niezwykle regularnym środku i trzech elementach, które na pierwszy rzut oka wyglądają jak warżki. Teraz wiemy już, że dwóch dodatkowych warżek tam nie ma. Są boczne płatki, które podczas rozwoju zaczęły realizować część programu właściwego dla innego organu. Za ich kształtem kryje się historia powielonych genów i ich współpracy, ewolucji storczykowego kwiatu, mutacji i innych zmian regulacji, laboratoryjnych niespodzianek oraz ludzkiej selekcji.
Ten sam kwiat wygląda przez to trochę inaczej niż na początku.
Można nadal uznać go za piękny albo za okropny. Peloriki mają szczególny talent do dzielenia kolekcjonerów i genetyka niczego tutaj nie rozstrzygnie. Trudniej jednak zobaczyć w nim już tylko dziwaczny kształt. Jego dwa niezwykłe płatki pokazują coś, czego zwyczajny kwiat pilnie przestrzega i właśnie dlatego prawie nigdy nam nie zdradza: reguły własnej budowy.
Dziwadło nie jest marginesem biologii. Czasem właśnie ono najlepiej pokazuje, jak działa norma.
Bibliografia i źródła naukowe — kliknij, aby rozwinąć ↓— kliknij, aby zwinąć ↑
- Tsai W.-C. et al. (2004). Four DEF-like MADS box genes displayed distinct floral morphogenetic roles in Phalaenopsis orchid. Plant and Cell Physiology 45(7):831–844. DOI: 10.1093/pcp/pch095
- Chen Y.-H. et al. (2005). Transcription analysis of peloric mutants of Phalaenopsis orchids derived from tissue culture. Cell Research 15:639–657. DOI: 10.1038/sj.cr.7290334
- Mondragón-Palomino M., Theissen G. (2009). Why are orchid flowers so diverse? Reduction of evolutionary constraints by paralogues of class B floral homeotic genes. Annals of Botany 104(3):583–594. DOI: 10.1093/aob/mcn258
- Miguel C., Marum L. (2011). An epigenetic view of plant cells cultured in vitro: somaclonal variation and beyond. Journal of Experimental Botany 62(11):3713–3725. DOI: 10.1093/jxb/err155
- Mondragón-Palomino M., Theissen G. (2011). Conserved differential expression of paralogous DEFICIENS- and GLOBOSA-like MADS-box genes in the flowers of Orchidaceae: refining the “orchid code”. The Plant Journal 66(6):1008–1019. DOI: 10.1111/j.1365-313X.2011.04560.x
- Acri-Nunes-Miranda R., Mondragón-Palomino M. (2014). Expression of paralogous SEP-, FUL-, AG- and STK-like MADS-box genes in wild-type and peloric Phalaenopsis flowers. Frontiers in Plant Science 5:76. DOI: 10.3389/fpls.2014.00076
- Wang F. et al. (2026). Molecular mechanisms underlying floral trait formation in Phalaenopsis orchids. Horticulture Research 13(3):uhaf340. DOI: 10.1093/hr/uhaf340
© Tekst: Marzenna Kielan
Ilustracje: M. KIELAN / CC BY-NC-SA 2.0
Ilustracje autorskie przygotowane z wykorzystaniem AI.