Co robi liść Phalaenopsis, kiedy gasimy światło?
Wieczorem świat powoli zwalnia. Cichnie dom, gasną światła, człowiek poprawia poduszkę i z poczuciem dobrze spełnionego obowiązku zostawia storczyka samemu sobie. Podlany, obejrzany z każdej strony, być może nawet pochwalony za nowy korzeń, Phalaenopsis stoi nieruchomo na parapecie i sprawia wrażenie, jakby również zamierzał udać się na spoczynek.
Kiedy my kończymy dzień, w jego liściach właśnie zaczyna się nocna zmiana.
Nie zapala się żadne światło, nie wyją syreny, nikt nie odbija karty przy wejściu. Otwierają się natomiast aparaty szparkowe, mikroskopijne przejścia łączące wnętrze liścia z atmosferą. Przez nie zaczyna napływać dwutlenek węgla, a zakład, który przez cały dzień pracował za zamkniętymi drzwiami, przestawia się na zupełnie inny tryb działania.
Phalaenopsis prowadzi bowiem fotosyntezę typu CAM. Skrót pochodzi od angielskiego Crassulacean Acid Metabolism, po polsku: kwasowy metabolizm roślin gruboszowatych. Nazwa upamiętnia rodzinę roślin, u których wcześnie opisano charakterystyczne dobowe zmiany zakwaszenia tkanek, ale sam mechanizm występuje również u wielu kaktusów, bromelii i storczyków.
Nie jest to zdolność do prowadzenia całej fotosyntezy bez światła. CAM jest przede wszystkim mistrzowsko ułożonym grafikiem: pobieranie znacznej części dwutlenku węgla odbywa się nocą, a jego wykorzystanie w cyklu Calvina głównie za dnia.
W tym artykule
— kliknij, aby rozwinąć ↓
— kliknij, aby zwinąć ↑
Słowniczek nocnej zmiany
— kliknij, aby rozwinąć ↓
— kliknij, aby zwinąć ↑
| CAM | Sposób organizacji fotosyntezy, w którym pobieranie znacznej części CO₂ i jego wykorzystanie w cyklu Calvina zostają rozdzielone w czasie: pierwsze odbywa się głównie nocą, drugie za dnia. |
|---|---|
| Aparaty szparkowe | Mikroskopijne przejścia w skórce liścia, przez które roślina wymienia gazy z otoczeniem i traci parę wodną. |
| PEPC | Karboksylaza fosfoenolopirogronianowa, enzym przejmujący nocną dostawę węgla u roślin CAM. |
| PEP | Fosfoenolopirogronian, związek, do którego PEPC przyłącza nocą pobrany węgiel. |
| Jabłczan i kwas jabłkowy | Postacie chemicznego „opakowania”, w którym węgiel może zostać zmagazynowany w wakuoli do rana. |
| Wakuola | Duża przestrzeń wewnątrz komórki roślinnej, pełniąca między innymi funkcję magazynu wody i rozmaitych związków. |
| Rubisco | Enzym, który za dnia wprowadza węgiel z CO₂ do cyklu Calvina. Bywa kłopotliwy, ponieważ potrafi przyłączyć również tlen. |
| Cykl Calvina | Szereg reakcji, dzięki którym roślina wykorzystuje węgiel z CO₂ do budowy związków organicznych. |
| Fotooddychanie | Proces zapoczątkowany wtedy, gdy Rubisco zamiast CO₂ przyłączy tlen; kosztuje roślinę energię i część wcześniej związanego węgla. |
| CAM na biegu jałowym | Awaryjny tryb pracy podczas silnej suszy: aparaty szparkowe pozostają zamknięte, a CO₂ powstający w oddychaniu jest przechwytywany i wykorzystywany ponownie wewnątrz liścia. |
Fabryka w koronie drzewa
Aby zrozumieć, dlaczego Phalaenopsis urządził sobie przedsiębiorstwo pracujące na dwie zmiany, trzeba na chwilę opuścić bezpieczny parapet i przenieść się do tropikalnego lasu. Większość gatunków tego rodzaju to epifity: rosną na drzewach, lecz nie pasożytują na nich. Korzystają z pni i konarów jak z podpory, dzięki której mogą dotrzeć bliżej światła.
Taka lokalizacja ma swoje zalety, ale wodociągu do korony drzewa nikt nie doprowadził. Korzenie nie tkwią w glebie, z której można regularnie pobierać wodę. Po deszczu są mokre, chwilę później zaczynają wysychać, a następna dostawa może pojawić się jutro, za tydzień albo dopiero wtedy, kiedy wreszcie spadnie kolejny deszcz.
Liść musi zatem oszczędzać wodę. Jednocześnie potrzebuje dwutlenku węgla, bez którego nie zbuduje cukrów i innych związków organicznych. Problem polega na tym, że wpuszczając CO₂ przez aparaty szparkowe, otwiera także drogę ucieczki parze wodnej. Dla większości roślin jest to koszt prowadzenia działalności. Phalaenopsis uznał jednak, że można go znacząco ograniczyć.
Nocą powietrze jest zwykle chłodniejsze, a jego wilgotność względna wyższa. Różnica pomiędzy ilością pary wodnej wewnątrz liścia i w otaczającym go powietrzu maleje, dlatego po otwarciu aparatów szparkowych roślina traci mniej wody. Właśnie wtedy najbezpieczniej przyjąć dostawę dwutlenku węgla.
Tyle że nocą nie ma światła, a bez niego nie można przeprowadzić wszystkich reakcji potrzebnych do fotosyntezy. Należało więc wymyślić magazyn.
Dostawy przyjmujemy po zmroku
Dwutlenek węgla, który nocą wnika do liścia, nie trafia od razu do Rubisco. To najważniejszy enzym dziennej zmiany: przejmuje CO₂ i wprowadza zawarty w nim węgiel do szeregu reakcji prowadzących do budowy związków organicznych. Ten szereg reakcji nazywamy cyklem Calvina.
Na nocną zmianę przychodzi jednak inny enzym: karboksylaza fosfoenolopirogronianowa, znana jako PEPC, ponieważ nawet biochemicy czasem okazują człowiekowi odrobinę litości.
PEPC przyłącza pobrany z powietrza węgiel do związku nazywanego fosfoenolopirogronianem, czyli PEP. Powstaje szczawiooctan, który niemal natychmiast zostaje przekształcony w jabłczan.
Nazwy brzmią tak, jakby za chwilę miało odbyć się kolokwium, ale sens całej operacji jest prosty: węgiel pobrany z atmosfery zostaje umieszczony w chemicznym opakowaniu, w którym może bezpiecznie doczekać rana.
Sam PEP nie bierze się znikąd. Phalaenopsis należy do roślin CAM gromadzących zapas węglowodanów przede wszystkim w postaci skrobi. Nocą część tej skrobi zostaje rozłożona, aby dostarczyć materiału potrzebnego do przygotowania PEP. Roślina wykorzystuje zatem część węgla zdobytego wcześniej, żeby zastawić pułapkę na następną porcję.
Jabłczan trafia do wakuoli, dużej przestrzeni zajmującej znaczną część komórki liścia, i jest tam przechowywany głównie w postaci kwasu jabłkowego. Gruby, mięsisty liść Phalaenopsis służy również jako magazyn. Jego duże komórki i obszerne wakuole tworzą magazyny, do których przez całą noc można kierować kolejne partie związku zawierającego schwytany węgiel.
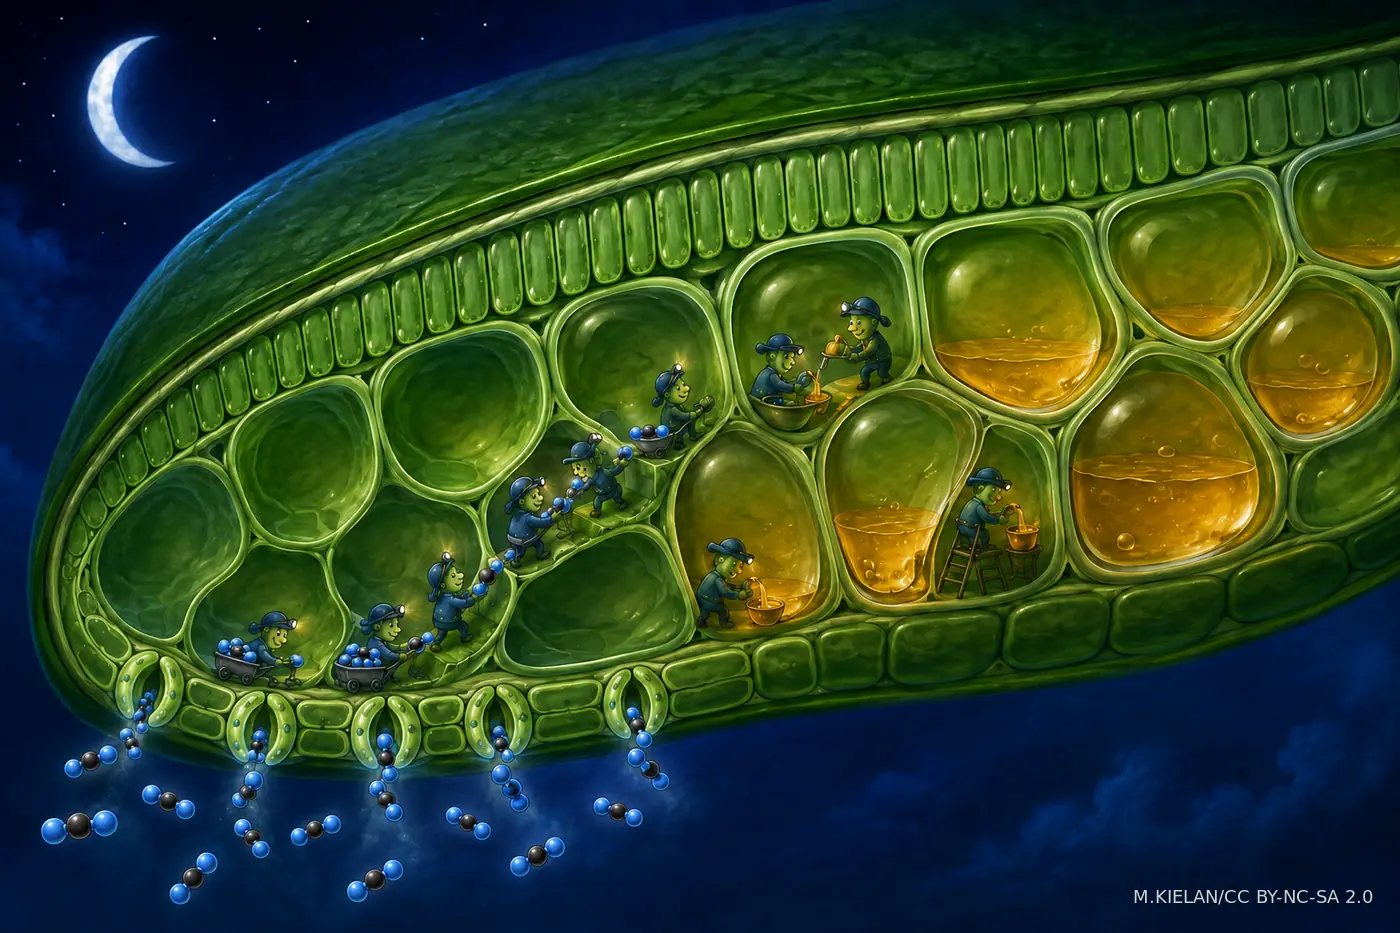
Oczywiście magazyn nie jest z gumy. Ma określoną pojemność, a wypełnianie go kwasem zmienia właściwości chemiczne tkanek. W ciągu nocy liść stopniowo kwaśnieje. Najwięcej kwasu jabłkowego zawiera zwykle nad ranem, gdy nocna zmiana kończy pracę, wakuole są pełne, a kierownik magazynu zaczyna z niepokojem spoglądać na ostatnie wolne miejsce między regałami.
Z zewnątrz nic się nie zmieniło. O świcie liść wygląda dokładnie tak samo jak wieczorem, ale jego skład chemiczny jest już inny. W wakuolach zgromadził się kwas jabłkowy, wzrosła kwasowość liścia, a pobrany nocą węgiel czeka na wykorzystanie podczas dziennej zmiany.
Poranne przekazanie zmiany
Wraz z pojawieniem się światła rozpoczyna się druga część operacji. Aparaty szparkowe stopniowo się zamykają, ograniczając dzienną utratę wody. Kwas jabłkowy opuszcza wakuole, a zawarty w nim węgiel zostaje ponownie uwolniony w postaci CO₂.
Teraz do pracy przystępuje znane nam już Rubisco. Wprowadza CO₂ do cyklu Calvina, w którym zawarty w nim węgiel zostaje włączony do związków organicznych. Energię potrzebną do przeprowadzenia tych reakcji zapewnia światło.
Rubisco ma przy tym pewną kłopotliwą właściwość: potrafi przyłączać nie tylko CO₂, lecz także tlen. Zapoczątkowuje wtedy fotooddychanie, podczas którego roślina zużywa energię i traci część wcześniej związanego węgla, zamiast przeznaczać te zasoby na wzrost.
Uwalnianie CO₂ z kwasu jabłkowego za zamkniętymi aparatami szparkowymi podnosi jego stężenie wewnątrz liścia, zwiększając szansę, że Rubisco wybierze właściwy gaz.
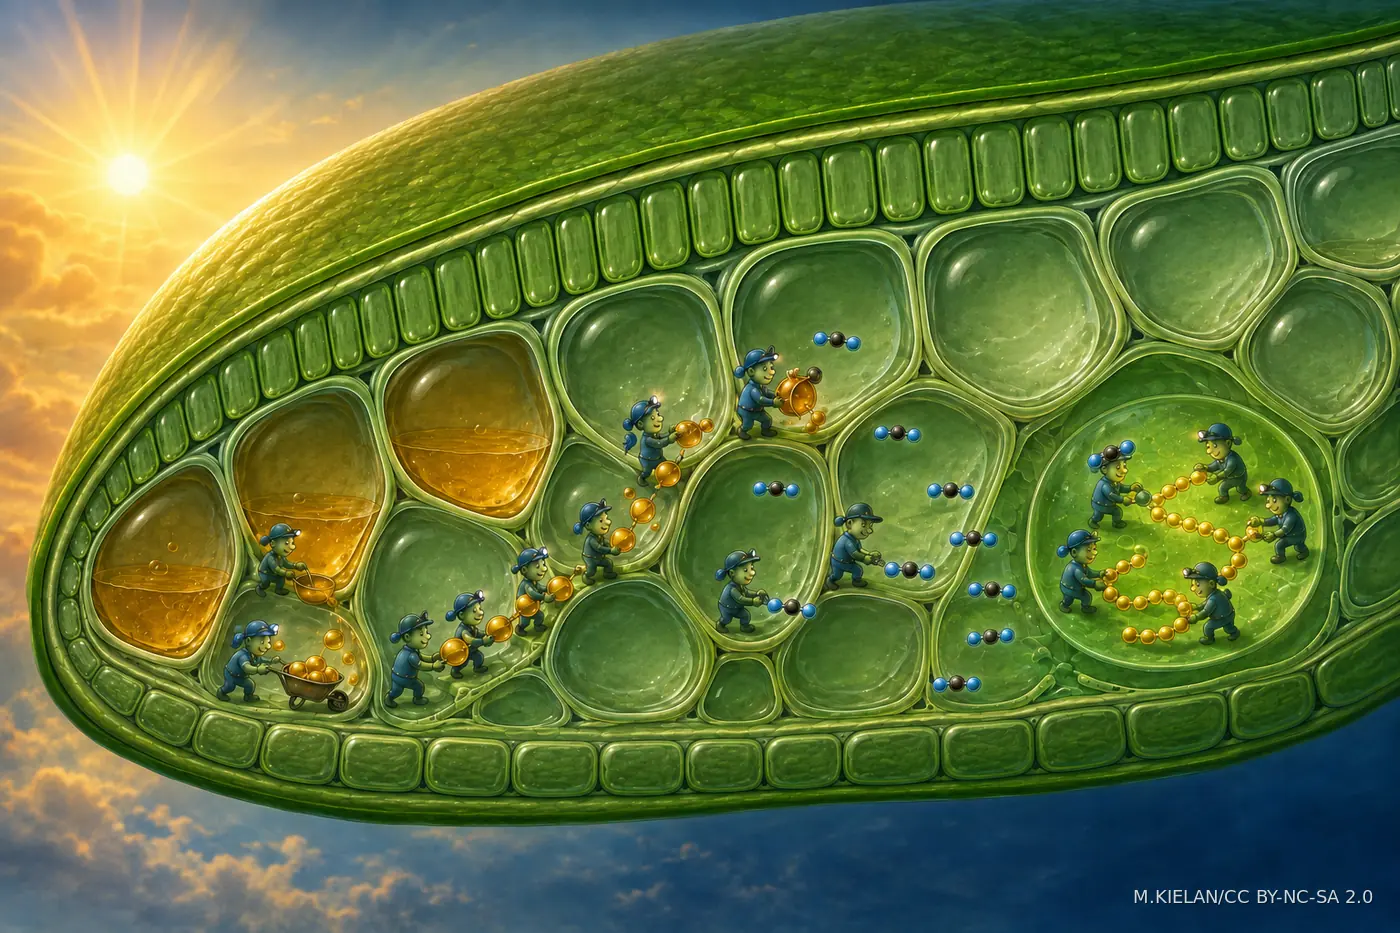
Dzienna zmiana pracuje więc przy zamkniętych drzwiach, korzystając z zapasów przygotowanych przez nocnych magazynierów. Phalaenopsis może prowadzić fotosyntezę, nie pozostawiając aparatów szparkowych otwartych w najcieplejszej części dnia, a równocześnie dostarcza Rubisco skoncentrowaną porcję CO₂.
Nocna zmiana korzysta z zapasów przygotowanych za dnia. Nocne wiązanie CO₂ wymaga PEP przygotowanego z zapasowych węglowodanów. Za dnia trzeba wykorzystać zgromadzony węgiel, uzupełnić zapasy i dostarczyć energię potrzebną do przeprowadzenia kolejnego cyklu.
Jeżeli więc Phalaenopsis otrzymuje zbyt mało światła, skutki nie kończą się wraz z zachodem słońca. Niedostateczna praca dziennej zmiany wpływa na to, co fabryka będzie w stanie zrobić następnej nocy. Badania prowadzone na uprawnych Phalaenopsis wykazały, że ilość światła otrzymanego w dzień może zmieniać późniejsze nocne pobieranie CO₂. W tej firmie zaniedbania jednej zmiany są skrupulatnie przekazywane następnej, zapewne w trzech egzemplarzach i z podpisem kierownika.
Nie tylko noc i dzień
Najprostszy opis CAM brzmi niezwykle elegancko: nocą aparaty szparkowe są otwarte, a za dnia zamknięte. Niestety biologia, jak zwykle, po wysłuchaniu eleganckiego wyjaśnienia zaczyna zgłaszać poprawki.
W klasycznym cyklu CAM wyróżnia się cztery fazy. Pierwsza przypada na noc. Aparaty szparkowe są otwarte, PEPC wiąże napływający węgiel, a w wakuolach gromadzi się kwas jabłkowy. Nad ranem następuje krótka faza przejściowa. Światło już się pojawiło, aparaty szparkowe nie zdążyły się jeszcze całkowicie zamknąć, a sterowanie wiązaniem węgla przechodzi stopniowo z PEPC na Rubisco.
Trzecia faza zajmuje znaczną część dnia. Aparaty szparkowe pozostają zamknięte, kwas jabłkowy jest rozkładany, a uwolniony z niego CO₂ trafia do cyklu Calvina. Późnym popołudniem, jeśli zapas w magazynie został wyczerpany i warunki są sprzyjające, aparaty szparkowe mogą ponownie zacząć się otwierać. Roślina przez pewien czas pobiera wtedy CO₂ bezpośrednio z powietrza.
Tak wygląda model, lecz granice między fazami nie są wyryte w liściu. Zmieniają się zależnie od ilości światła, temperatury, dostępności wody, wilgotności powietrza, długości dnia i kondycji samej rośliny. U badanej hybrydy ‘Sacramento’ przy sztucznie wydłużonym, szesnastogodzinnym dniu pod koniec okresu oświetlenia większą rolę ponownie zaczynała odgrywać PEPC, chociaż klasyczny model przypisuje tę część dnia głównie Rubisco.
Swój udział ma również wewnętrzny zegar biologiczny. Wraz z nadejściem nocy w komórkach uruchamiane są mechanizmy przygotowujące PEPC do wiązania dwutlenku węgla. Roślina nie reaguje więc wyłącznie na brak światła. Jej metabolizm działa według własnego rytmu dobowego, który może być dodatkowo korygowany przez warunki otoczenia.
Dlatego zdanie „Phalaenopsis pobiera CO₂ wyłącznie nocą” jest zbyt kategoryczne. Znaczna część pobierania rzeczywiście odbywa się po ciemku, ale możliwa jest również wymiana gazowa o świcie i późnym popołudniem.
Zmienia się także sposób pracy rośliny w trakcie rozwoju. W części badań młodsze liście i młode rośliny wykazywały większy udział dziennego pobierania CO₂ niż liście dojrzałe i starsze rośliny. Wielkość tych różnic zależała jednak od badanego materiału i warunków doświadczenia. Osobne doświadczenia nad rozwojem siewek pokazały, że najmłodsze rośliny pobierały większą część CO₂ za dnia, a charakterystyczny rytm CAM rozwijał się stopniowo wraz z powstawaniem pierwszych liści. Nie oznacza to jednak, że każdy nowy liść dorosłego Phalaenopsis zaczyna pracę od początku w taki sam sposób. Są to dwa różne etapy rozwoju i nie należy wrzucać ich do jednej doniczki.
Nawet w obrębie jednej rośliny nie wszystkie wydziały fabryki muszą zatem pracować według identycznego grafiku.
Oszczędność, która ma swoją cenę
CAM pozwala ograniczyć straty wody i zmniejszyć fotooddychanie. Ta oszczędność wymaga jednak dodatkowych nakładów energii. Nocne wiązanie CO₂, transport jabłczanu do wakuoli i jego późniejsze wydobywanie wymagają energii. Pojemność magazynu jest ograniczona rozmiarami komórek i wakuoli, a przygotowanie PEP zużywa część zgromadzonych wcześniej węglowodanów.
Roślina korzystająca z prostszego sposobu fotosyntezy może w sprzyjających warunkach pobierać CO₂ przez znaczną część dnia i stosunkowo szybko wytwarzać nowe liście, korzenie oraz pędy. Phalaenopsis wymienia część tej wydajności na bezpieczeństwo wodne. Jego strategia nie polega na zdobyciu jak największej ilości węgla w jak najkrótszym czasie, lecz na zdobywaniu go bez otwierania wszystkich kranów jednocześnie.
To jeden z powodów, dla których ćmówki nie słyną z tempa wzrostu godnego dyni olbrzymiej.
Stan wyjątkowy
CAM pozwala bardzo oszczędnie gospodarować wodą, ale nie jest pozwoleniem na bezkarne suszenie storczyka. Phalaenopsis nie potrafi wyprodukować wody z dobrej opinii o własnej odporności, podobnie jak nie zbuduje nowych tkanek z samego samozaparcia.
Podczas przedłużającej się suszy nocne pobieranie CO₂ stopniowo maleje. Jeśli brak wody staje się poważny, aparaty szparkowe mogą pozostać zamknięte przez całą dobę. Roślina przestaje wtedy przyjmować nowy dwutlenek węgla z atmosfery i przechodzi w tryb określany po angielsku jako CAM idling, czyli obrazowo: CAM na biegu jałowym.
Nie oznacza to, że wszystkie procesy metaboliczne ustają. Komórki nadal oddychają, zużywając tlen i uwalniając CO₂. Zamknięcie aparatów szparkowych silnie ogranicza ucieczkę dwutlenku węgla, dzięki czemu część CO₂ powstającego w oddychaniu może zostać ponownie wykorzystana. Nocą zostaje ponownie związany i zmagazynowany w postaci kwasu jabłkowego, a za dnia jeszcze raz uwolniony i wykorzystany w cyklu Calvina. Węgiel krąży zatem wewnątrz liścia w niemal zamkniętym obiegu.
Roślina nie zdobywa w ten sposób nowych zasobów i nie może normalnie rosnąć. Ogranicza jednak utratę wody oraz węgla, który w przeciwnym razie uleciałby do atmosfery. Jest to tryb przetrwania, nie oszczędnościowa wersja zwykłego funkcjonowania.
Nazwa „CAM na biegu jałowym” dobrze oddaje sytuację. Fabryka nie przyjmuje nowych dostaw; przepakowuje tylko to, co nadal krąży wewnątrz zakładu.
W doświadczeniu z Phalaenopsis ‘Edessa’ po sześciu tygodniach bez podlewania nie obserwowano już pobierania CO₂ netto. Była to reakcja na poważny niedobór wody, a nie przykład dobrego funkcjonowania bez podlewania.
Mechanizm chroniący przed utratą wody nie jest tym samym co niewrażliwość na jej brak.
Storczyk w sypialni i legenda o nocnym tlenie
W tym miejscu zwykle pojawia się opowieść o storczyku, który nocą produkuje tlen, dlatego powinien stać w sypialni i czuwać nad jakością naszego snu. Historia ma wszystko, czego potrzeba dobremu mitowi: odrobinę prawdy, naukowo brzmiące wyjaśnienie i bardzo przyjemny wniosek. Niestety mechanizm CAM nie daje roślinie nocnej licencji na produkcję tlenu.
Tlen uwalniany podczas fotosyntezy pochodzi z rozszczepiania cząsteczek wody w fotosystemie II. Fotosystem II to znajdujący się w chloroplastach zespół białek i barwników, który pochłania energię światła. Bez światła nie zachodzi fotosyntetyczne rozszczepianie wody, z którego powstaje tlen.
Nocą storczyk, podobnie jak inne rośliny, oddycha. Zużywa tlen i uwalnia CO₂, chociaż część powstającego dwutlenku węgla może od razu ponownie związać. Otwarty aparat szparkowy jest przejściem dla gazów, nie małym nocnym generatorem tlenu.
Phalaenopsis pobiera znaczną część dwutlenku węgla nocą, natomiast tlen powstaje podczas reakcji fotosyntezy zależnych od światła, czyli za dnia.
Czy wobec tego storczyk nie powinien stać w sypialni? Może stać. Może również stać w salonie, gabinecie albo w miejscu, z którego najlepiej go widać. W zwykłym, wentylowanym pokoju wymiana gazowa pojedynczej rośliny jest znikoma w porównaniu z oddychaniem człowieka i naturalną wymianą powietrza. Jeżeli ktoś zasypia spokojniej w otoczeniu ćmówek, trudno mieć do niego pretensje. Nie należy tylko obarczać fotosystemu II odpowiedzialnością za efekt, którego nie wywołał.
Gdy dom zasypia
Liść Phalaenopsis wygląda jak konstrukcja nieskomplikowana: zielona, gruba, nieruchoma. Nie zdradza, że jego funkcjonowanie wymaga precyzyjnego odmierzania czasu, kontrolowania przepływu gazów, przestawiania szlaków metabolicznych oraz transportowania związków pomiędzy różnymi częściami komórki.
Nocą otwiera przejścia prowadzące do atmosfery, przechwytuje dwutlenek węgla i pakuje zawarty w nim węgiel do chemicznego magazynu. Nad ranem zamyka drzwi. Za dnia rozpakowuje zapasy i prowadzi fotosyntezę, tracąc przy tym znacznie mniej wody, niż gdyby musiał pobierać CO₂ w pełnym świetle i cieple.
Nie jest to cudowny sposób na życie bez wody ani nocna produkcja tlenu. To kompromis: złożony, kosztowny i niezwykle skuteczny w świecie, w którym korzeń czepiający się konaru nie może liczyć na codzienną dostawę wilgoci.
Kiedy więc następnym razem wieczorem spojrzysz na ćmówkę stojącą spokojnie na parapecie, możesz zgasić światło bez wyrzutów sumienia. Roślina nie kończy pracy.
Bibliografia i źródła naukowe
— kliknij, aby rozwinąć ↓
— kliknij, aby zwinąć ↑
- Cushman J.C. (2001). Crassulacean acid metabolism. A plastic photosynthetic adaptation to arid environments. Plant Physiology 127(4): 1439–1448. DOI: 10.1104/pp.127.4.1439
- Dodd A.N., Borland A.M., Haslam R.P., Griffiths H., Maxwell K. (2002). Crassulacean acid metabolism: plastic, fantastic. Journal of Experimental Botany 53(369): 569–580. DOI: 10.1093/jexbot/53.369.569
- Ota K., Morioka K., Yamamoto Y. (1991). Effects of leaf age, inflorescence, temperature, light intensity and moisture conditions on CAM photosynthesis in Phalaenopsis. Journal of the Japanese Society for Horticultural Science 60(1): 125–132. DOI: 10.2503/jjshs.60.125
- Guo W.J., Lee N. (2006). Effect of leaf and plant age, and day/night temperature on net CO₂ uptake in Phalaenopsis amabilis var. formosa. Journal of the American Society for Horticultural Science 131(3): 320–326. DOI: 10.21273/JASHS.131.3.320
- Ping C.-Y., Chen F.-C., Cheng T.-C., Lin H.-L., Lin T.-S., Yang W.-J., Lee Y.-I. (2018). Expression profiles of phosphoenolpyruvate carboxylase and phosphoenolpyruvate carboxylase kinase genes in Phalaenopsis, implications for regulating the performance of Crassulacean Acid Metabolism. Frontiers in Plant Science 9: 1587. DOI: 10.3389/fpls.2018.01587
- Ceusters N., Valcke R., Frans M., Claes J.E., Van den Ende W., Ceusters J. (2019). Performance index and PSII connectivity under drought and contrasting light regimes in the CAM orchid Phalaenopsis. Frontiers in Plant Science 10: 1012. DOI: 10.3389/fpls.2019.01012
- Hogewoning S.W., van den Boogaart S.A.J., van Tongerlo E., Trouwborst G. (2021). CAM-physiology and carbon gain of the orchid Phalaenopsis in response to light intensity, light integral and CO₂. Plant, Cell & Environment 44(3): 762–774. DOI: 10.1111/pce.13960
- Ceusters N., Frans M., Van den Ende W., Ceusters J. (2019). Maltose Processing and Not β-Amylase Activity Curtails Hydrolytic Starch Degradation in the CAM Orchid Phalaenopsis. Frontiers in Plant Science 10: 1386. DOI: 10.3389/fpls.2019.01386
Opowieści zapisane w liściu
- Nocna zmiana — jesteś tutaj
- Zbiornik na czarną godzinę — w przygotowaniu
- Nie ruszę się stąd — w przygotowaniu
Czytaj również: opowieści o korzeniu
Copyright © Marzenna Kielan. Wszystkie prawa zastrzeżone.